Cómo un virus antiguo silenció un gen cerebral en los chimpancés
Un virus antiguo que infectó solo a los antepasados del chimpancé silenció un gen humano del desarrollo cerebral. Qué demuestran las pruebas con CRISPR y organoides, y qué no.
Dos placas descansan una junto a otra en un laboratorio de células madre en Lund, Suecia. En una, unos cientos de miles de células se han plegado en diminutas bolas de tejido cerebral temprano, cultivadas a partir de un donante humano. En la otra, la misma receta ha producido el mismo tipo de bolas a partir de un chimpancé. Tras quince días, las dos se ven casi idénticas al microscopio: las mismas rosetas neurales en forma de anillo, la misma mezcla de células jóvenes, los mismos marcadores iluminándose en los mismos lugares.
Luego los investigadores leen qué genes están activados. En las bolas humanas, un gen está muy activo. En las del chimpancé, ese mismo gen está completamente en silencio, como si alguien le hubiera desenchufado el cable. Nada en la secuencia propia del gen lo explica. Lo que lo explica es un tramo de ADN extraño, de unas siete mil letras, que se encuentra dentro del gen en los chimpancés y en ningún lugar de nosotros: el fósil de un virus.
El estudio, del grupo de Johan Jakobsson en la Universidad de Lund con colegas de Gotemburgo, Uppsala, Minnesota y Seattle, apareció el 23 de octubre de 2026 en Science Advances. Su afirmación principal es cauta pero llamativa: un retrovirus antiguo que infectó a los antepasados de los chimpancés, y nunca a los nuestros, dejó una marca que todavía mantiene apagado en las células del chimpancé un gen cerebral exclusivo de los humanos. Informamos del resultado el día de su publicación. Esta historia examina cómo funciona el experimento, por qué la evidencia es más sólida de lo que puede mostrar un titular y dónde termina.
Casi los mismos genes, cerebros muy distintos
El enigma es antiguo. El cerebro humano es aproximadamente tres veces más grande que el de un chimpancé, con más neuronas en la corteza y más conexiones entre ellas. Sin embargo, humanos y chimpancés comparten más del 96 % de sus secuencias codificantes de proteínas. Si las recetas de los ladrillos básicos son casi las mismas, la diferencia debe estar en otro lugar.
Los biólogos la han buscado en la parte del genoma que no codifica proteínas: los interruptores, reguladores de intensidad y marcapáginas que deciden qué genes se leen, cuándo y con qué fuerza. Ese territorio no codificante es enorme y difícil de leer. Uno de sus mayores componentes está formado por elementos transponibles, secuencias de ADN capaces de copiarse en lugares nuevos. Trabajos anteriores, incluidos los del mismo grupo de Lund, ya habían vinculado algunas de estas secuencias con la actividad génica específica de los humanos en el cerebro en desarrollo. Pero, como dice el nuevo artículo, la contribución de tales elementos a la especiación cerebral de los primates «sigue en gran parte sin explorar».
Entre los elementos transponibles, una familia tiene un origen especialmente vívido. Los retrovirus endógenos, o ERV, son los restos de infecciones reales.
Cómo un virus pasa a formar parte del genoma
Un retrovirus copia su material genético en el ADN de la célula que infecta. Normalmente esa célula muere con el huésped y el ADN viral se va con ella. Pero, muy de vez en cuando, la célula infectada es un óvulo, un espermatozoide o una célula embrionaria temprana. Entonces el ADN viral se hereda como cualquier otro tramo del genoma. Si el linaje portador sobrevive, la inserción puede extenderse por toda la población y quedar fijada, igual en cada individuo.
Esto ocurrió muchas veces en la historia de los primates. Al menos el 8 % de los genomas humano y de chimpancé consiste en tales restos, ya sean provirus completos o solo las secuencias cortas de sus extremos. Comparar los dos genomas muestra qué pandemias golpearon a cada linaje. En los aproximadamente cinco a siete millones de años transcurridos desde que nuestros antepasados se separaron de los de los chimpancés, solo un pequeño número de un grupo de retrovirus, HERV-K, se asentó en el genoma humano. El linaje del chimpancé fue invadido por algo mucho mayor.
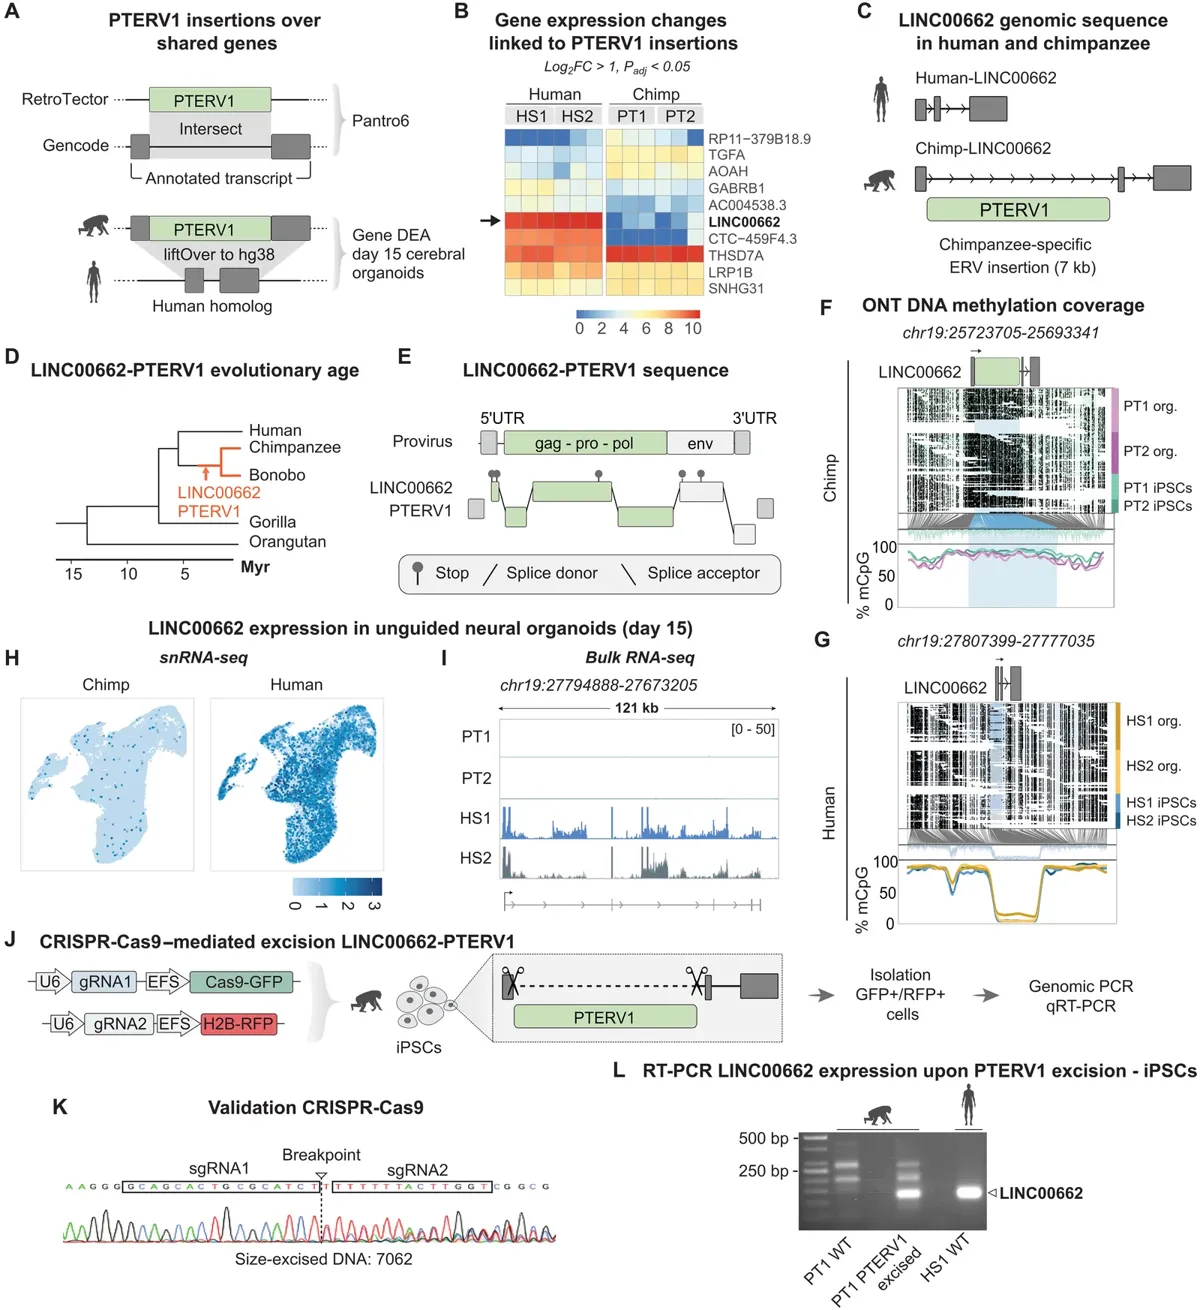
Ese algo es PTERV1, siglas de retrovirus endógeno 1 de Pan troglodytes. El nuevo artículo cuenta 158 elementos PTERV1 en el genoma de referencia del chimpancé, de entre 2 y 14 mil letras de longitud, lo que lo convierte en una de las familias de ERV más abundantes allí. PTERV1 también se encuentra en bonobos y gorilas, pero casi nunca en los mismos lugares: solo una inserción es compartida entre los linajes del chimpancé y del gorila. Ese patrón sugiere que el virus siguió reinvadiendo cada linaje por su cuenta. En los humanos está totalmente ausente.
Por qué nos libramos no está resuelto. Los autores señalan dos posibilidades. Una es geográfica: puede que nuestros antepasados simplemente no compartieran hábitat con los simios infectados. La otra es biológica: cada especie de primate produce una versión de una proteína antiviral llamada TRIM5α con distintos objetivos, y trabajos anteriores citados en el artículo mostraron que la versión humana impide que PTERV1 infecte células humanas. En cualquier caso, una pandemia que reescribió el ADN del chimpancé pasó de largo ante nosotros.
Una pandemia de este tipo es costosa para la especie que la sufre. Los autores señalan que probablemente hizo pasar a los antepasados de chimpancés y bonobos por un cuello de botella poblacional. Un paralelo moderno se desarrolla en Australia, donde el retrovirus del koala KoRV-A se está propagando entre koalas salvajes al tiempo que entra en sus células germinales, y donde ha venido acompañado de una mayor carga de enfermedad, incluida una alta prevalencia de cánceres. La endogenización, como se llama este proceso, es lo bastante rara en escalas de tiempo evolutivas como para que PTERV1 sea uno de los pocos casos que los investigadores aún pueden estudiar en el registro genómico.
Una forma de mirar un cerebro que nadie puede muestrear
Comparar los cerebros en desarrollo de humanos y chimpancés tiene un problema práctico: nadie puede tomar tejido cerebral temprano de un chimpancé. Durante años esto bloqueó todo el campo. La solución son las células madre pluripotentes inducidas, o iPSC. Los investigadores toman células ordinarias de piel o de sangre y las reprograman con un cóctel de factores hasta que se comportan como células madre embrionarias, capaces de convertirse en casi cualquier tejido. Hoy existen líneas de iPSC de chimpancé creadas por otros laboratorios, lo que abrió la puerta a este estudio.
El equipo de Lund usó dos líneas humanas y dos de chimpancé, una hembra y un macho de cada especie, y las sometió a un único protocolo para los llamados organoides neurales no guiados. «No guiados» significa que las células no se dirigen hacia ninguna región cerebral concreta; se autoorganizan en una mezcla de tejido neural temprano. El equipo ajustó el protocolo para que los organoides humanos y de chimpancé crecieran en condiciones casi idénticas. Al día 15 tenían el mismo tamaño, la misma forma y las mismas rosetas neurales. La secuenciación de ARN de núcleo único, que lee los genes activos en cada núcleo celular individual, mostró los mismos tipos celulares en ambas especies: sobre todo células progenitoras neurales y neuronas jóvenes.
Esa coincidencia es el cimiento silencioso de todo el resultado. Si los organoides de chimpancé hubieran crecido mal o de forma distinta, cualquier diferencia génica podría atribuirse a la placa de cultivo. Como los organoides eran tan parecidos, un gen que está activo en una especie y apagado en la otra difícilmente puede descartarse como un artefacto.
El segundo ingrediente técnico fue la secuenciación de ADN de lecturas largas en instrumentos de Oxford Nanopore. La máquina hace pasar moléculas individuales de ADN por un poro diminuto y lee no solo las letras sino también las etiquetas químicas que llevan, incluidos los grupos metilo que marcan el ADN como «silenciado». Como las lecturas son largas, pueden abarcar a la vez un virus insertado completo y sus alrededores, resolviendo la metilación en letras individuales en lugar de promediarla sobre miles de células.
158 islas de silencio
Lo primero que mostró la secuenciación fue que casi todas las copias de PTERV1 en las células madre de chimpancé y en los organoides de chimpancé del día 15 estaban totalmente metiladas. La metilación es la forma que tiene la célula de encerrar el ADN en el que no confía. Los restos virales son un blanco principal, porque un virus reactivado es peligroso. Los genomas de los primates tienen un elaborado escuadrón de defensa para esta tarea: una enorme familia de proteínas de unión al ADN llamadas proteínas de dedos de zinc KRAB (KZNF), que reconocen elementos transponibles y reclutan a una proteína asociada, TRIM28, que construye sobre ellos una estructura de cromatina compacta y silenciosa.
Los autores aún no han identificado qué KZNF reconoce a PTERV1, de modo que esa parte de la historia es un modelo y no una medición. Pero el resultado sí está medido: 158 islas de cromatina cerrada específicas del chimpancé, ninguna de las cuales existe en el genoma humano. Son, en palabras de los autores, dominios de heterocromatina específicos de especie. La defensa tiene un efecto secundario. Una marca destinada a mantener callado a un virus puede filtrarse al ADN vecino.
También hubo un indicio de que la evolución ha estado vigilando discretamente esta invasión. La mayoría de las copias de PTERV1 están entre genes. Cuando caen dentro de un gen, apuntan sobre todo en dirección opuesta a la del gen, que es la orientación con menos probabilidades de perturbarlo. Las copias que interferían más fueron presumiblemente eliminadas. Los autores lo interpretan como una señal de selección purificadora.
A la caza del gen que se silenció
Las islas de silencio solo son interesantes si caen cerca de algo. Así que el equipo hizo una pregunta concreta: ¿qué genes presentes en ambas especies contienen una inserción de PTERV1 enteramente en su cuerpo? La respuesta fue 45 genes. Luego comprobaron cuáles de ellos se comportan de forma distinta en los organoides humanos y de chimpancé, mediante secuenciación de ARN masiva y un umbral estándar: al menos el doble de diferencia de actividad, con significación estadística. Diez genes lo superaron, codificantes de proteínas y no codificantes por igual, la mayoría con el virus alojado en un intrón, un tramo no codificante dentro del gen.
El principal candidato fue un gen llamado LINC00662. No produce una proteína. Produce un ARN largo no codificante, o lncRNA: una molécula que se copia del ADN y luego hace su trabajo como ARN, sin traducirse nunca. En los organoides humanos LINC00662 estaba muy activo. En los organoides de chimpancé estaba completamente silenciado. Los otros nueve genes eran intrigantes por derecho propio; el artículo menciona, por ejemplo, un gen para una subunidad del receptor GABA-A, vinculado a la señalización sináptica y, según la bibliografía que citan los autores, a la esquizofrenia. Pero LINC00662 tenía el contraste de encendido y apagado más limpio.
Luego vino la comprobación que es fácil omitir en un resumen de noticias y difícil de falsear en un laboratorio: ¿es esto una rareza de dos líneas celulares de chimpancé? Los autores revisaron los datos públicos. LINC00662 está activo en modelos celulares humanos pero silenciado en células neurales de chimpancé, bonobo, orangután y macaco. Células madre inducidas de ocho chimpancés adicionales contaron la misma historia. Y los datos de tejido humano del proyecto GTEx muestran que el gen se lee ampliamente por todo el cuerpo, con mayor actividad en el cerebro y el testículo.
Anatomía de un fósil viral
La versión del locus LINC00662 del chimpancé presenta una gran diferencia respecto a la humana: un provirus PTERV1 insertado de 6915 letras, situado en el primer intrón del gen. Cuando los investigadores alinearon las dos secuencias, no encontraron otras diferencias importantes allí. En genética, eso es lo más parecido a un sospechoso sin coartada.
Los ensamblajes genómicos completos, de telómero a telómero, de grandes simios permitieron al equipo fechar aproximadamente el suceso. La inserción existe en chimpancés y bonobos pero no en humanos, así que ocurrió después de que se separara la línea humana y antes de que chimpancés y bonobos tomaran caminos distintos, en algún momento entre hace aproximadamente 1,5 y 5 millones de años. Los dos extremos del provirus, que son idénticos en el momento de la inserción, difieren solo en un 1,2 %, lo que confirma que la inserción es joven en términos evolutivos.
Los vecinos cuentan su propia historia. En gorilas y macacos falta todo el segmento de 300 mil letras que contiene LINC00662. Los orangutanes tienen la región del gen pero llevan un transposón distinto, un elemento LINE-1 de 8,8 mil letras, corriente arriba. Los autores concluyen que solo el genoma humano tiene una unidad LINC00662 funcional. El gen es, en ese sentido, un transcrito específico de los humanos, no un gen de chimpancé que se perdió.
El virus en sí está muerto. Sus genes de las proteínas del núcleo y de la envoltura están plagados de desplazamientos del marco de lectura y de señales de parada prematuras, de modo que el provirus es casi con certeza incapaz de producir nuevo virus. Es un fósil inerte. Pero muerto no significa inofensivo: su ADN sigue ahí para ser reconocido y bloqueado.
Y bloqueado está. Las lecturas de nanoporo mostraron que el virus insertado en las células de chimpancé está fuertemente metilado, y también las regiones que lo flanquean. En las células humanas el mismo locus está casi sin metilar. Una marca unida químicamente al virus parece haberse extendido hasta el sitio de inicio del propio gen. Otra capa de evidencia apunta en la misma dirección. En las células progenitoras neurales humanas el sitio de inicio del gen lleva H3K4me3, una modificación de histonas típica de los promotores activos; en las células de chimpancé esa marca falta y en su lugar hay metilación.
El experimento de rescate
La correlación no es una prueba. El paso decisivo fue quitar el virus y ver si el gen despierta. El equipo diseñó dos ARN guía dirigidos al ADN único a cada lado de la inserción y los introdujo con la enzima Cas9 en células madre de chimpancé mediante vectores lentivirales. Cas9 corta en ambos sitios y la célula repara la rotura uniendo los extremos exteriores, dejando fuera el tramo intermedio. La secuenciación de amplicones confirmó que el provirus de unas siete mil letras había sido extirpado.
Luego, la lectura. En las células de chimpancé editadas, LINC00662 se expresó. El gen que había estado silenciado en todas las muestras de chimpancé se encendió, sin que nada más cambiara en el locus.
«Esto demuestra que es, de hecho, la inserción viral la responsable de que el gen esté apagado en los chimpancés». — Patricia Gerdes, investigadora posdoctoral de la Universidad de Lund y primera autora del artículo, en el comunicado de prensa de la universidad
Vale la pena ser exactos sobre lo que esto resuelve. Resuelve que la inserción de PTERV1 es la causa del silencio de LINC00662 en estas células. No resuelve si esto tuvo consecuencias para los cerebros de los chimpancés. Gerdes fue explícita al respecto cuando habló con ScienceAlert: quitar la inserción «no demuestra que quitarla transformaría el desarrollo cerebral», y hacerlo en un cerebro adulto «no desharía el desarrollo previo del cerebro». El experimento se hizo en células madre en una placa, no en neuronas, y mucho menos en un animal.
Qué hace el gen en un cerebro humano
Si un gen es específico de los humanos y está silenciado en los chimpancés, la siguiente pregunta natural es qué hace en nosotros. Aquí el artículo pasa de la evolución a la biología celular. Los datos públicos muestran que la actividad de LINC00662 en el cerebro humano alcanza su máximo muy pronto, alrededor de las 10 a 12 semanas tras la concepción, y declina gradualmente hasta la edad adulta. El equipo confirmó la expresión en tejido de prosencéfalo fetal a las 7 y 11 semanas, y usó secuenciación de ARN de lecturas largas en cerebro fetal a las 9 y 10 semanas para mostrar que el gen se empalma y produce varias versiones de la molécula.
El lugar de la célula donde se encuentra la molécula insinúa su función. Algunos lncRNA actúan sobre el ADN cercano a donde se producen; otros trabajan lejos de él. El fraccionamiento celular mostró que LINC00662 se encuentra casi exclusivamente en el citoplasma, fuera del núcleo, por lo que actúa lejos de su propio gen. Para averiguar con qué trabaja, los investigadores usaron sondas de ADN marcadas con biotina para pescar la molécula junto con todo lo que estuviera adherido a ella, y luego identificaron las proteínas por espectrometría de masas. Una sonda dirigida a una secuencia ausente del genoma humano sirvió como control negativo.
Las proteínas capturadas junto a la molécula estaban enriquecidas en funciones de extensión axonal y desarrollo neural. Algunos ejemplos son FLNA, MYH10, nestina, vimentina y DPYSL2, todas parte del andamiaje interno de la célula, el citoesqueleto, y todas vinculadas en la bibliografía con la forma en que las neuronas jóvenes extienden sus ramas. En lenguaje llano, LINC00662 parece rondar la maquinaria molecular que permite a una neurona recién nacida desarrollar su cableado.
Apagarlo en organoides humanos
Para probar si la asociación significa algo, el equipo hizo la imagen especular del rescate. Silenciaron LINC00662 en células humanas mediante interferencia por CRISPR, una variante que no corta el ADN sino que coloca un represor en el sitio de inicio del gen. Como el dominio represor es el mismo que usa la célula para encerrar los transposones, también aumentó la metilación a lo largo del locus, lo que, señalan los autores, imita el estado epigenético de la versión del gen en el chimpancé. El silenciamiento fue casi completo.
En células progenitoras neurales humanas con el gen apagado, FLNA, MYH10 y nestina cambiaron de ubicación dentro de la célula, con más de cada una en el citoplasma. Los autores lo interpretan como que LINC00662 normalmente desestabiliza estas proteínas allí. Es una interpretación de datos de imagen de unas pocas docenas de células por condición, y el propio artículo la trata como sugerente más que definitiva.
Los organoides cuentan una historia más concreta. El equipo cultivó organoides silenciados y de control durante 15 y 30 días. A los 15 días eran indistinguibles. A los 30 días, cuando las neuronas recién nacidas normalmente empiezan a emitir sus primeras extensiones, los organoides silenciados mostraron una tinción notablemente más débil para TUJ1, una proteína del esqueleto interno de las neuronas jóvenes, en la zona donde se sitúan esas células. Las propias rosetas, formadas por células progenitoras, se veían iguales. Un segundo marcador, MAP2, mostró la misma tendencia pero no alcanzó significación estadística.
La secuenciación de núcleo único de 119 674 núcleos de 85 organoides, 61 silenciados y 24 de control, mostró que la ausencia del gen no cambió qué tipos celulares aparecieron. Lo que cambió, al día 30, fue la actividad de genes vinculados al crecimiento de axones y dendritas. Quizá sorprendentemente, muchos de ellos estaban aumentados, no disminuidos, entre ellos NOTCH1, CDH4, SLIT3 y KALRN. Los autores sugieren una retroalimentación compensatoria: las neuronas que tienen dificultades para extender sus ramas podrían aumentar la actividad de los genes de crecimiento de ramas como respuesta. Dicen con franqueza que no lo entienden del todo.
La imagen que surge es la de un gen que no decide en qué se convierte una neurona, sino que afecta a lo bien que madura una vez que existe. Es un papel modesto. Es también precisamente el tipo de papel que el campo sospecha desde hace tiempo que importa para los cerebros humanos: los autores señalan que sus resultados respaldan la idea de que las diferencias en cómo maduran las dendritas y las sinapsis ayudan a producir funciones cerebrales específicas de los humanos.
¿Tendría un humano con la inserción un cerebro de chimpancé?
La pregunta que se hará todo lector es la obvia: ¿tendría un humano con esta inserción un cerebro parecido al de un chimpancé? Los autores no afirman eso, y la autora principal explicó por qué. Hablando con ScienceAlert, Gerdes dijo que si los humanos tuvieran la misma inserción «probablemente habría apagado LINC00662 y alterado el desarrollo de las células cerebrales». Pero añadió: «no podemos predecir que esto produjera una forma cerebral, una capacidad o una conducta concretas. El efecto también podría depender del ADN humano circundante y de otros genes».
Esa cautela está incorporada en los datos. Los organoides eran modelos pequeños, en una etapa temprana, cultivados durante no más de un mes. La pérdida de LINC00662 redujo un marcador de maduración neuronal en una zona concreta de esos organoides; ningún experimento midió el tamaño del cerebro, su plegamiento ni la cognición. El silenciamiento se hizo en células humanas, porque el gen es específico de los humanos; nadie ha puesto todavía el gen en neuronas de chimpancé para ver si maduran de forma distinta.
También hay preguntas mecanísticas abiertas que los propios autores mencionan. No se ha encontrado qué proteína de dedos de zinc KRAB reconoce a PTERV1. Exactamente cómo el silencio de la inserción se propaga al promotor vecino requiere más trabajo molecular. Y los lncRNA son notoriamente difíciles de estudiar en placas, lo que, dicen los autores, limita la interpretación de muchos estudios comparativos de neuronas humanas y de chimpancé derivadas de células madre.
Los propios datos del estudio sugieren que LINC00662 es un ejemplo y no la explicación. Los autores encontraron 158 islas de PTERV1 y 45 genes con una inserción enteramente en su interior, de los cuales diez diferían entre especies. Otro de ellos, LRP1B, ha sido vinculado en la bibliografía con varios cánceres. Los autores concluyen que la influencia de PTERV1 sobre la regulación génica en los chimpancés puede ser amplia, y señalan que la propagación de la metilación a genes vecinos se ha documentado para otras clases de repeticiones en muchas especies.
La lectura más cuidadosa es, por tanto, una modesta y a la vez interesante. La pandemia retroviral que golpeó a los antepasados del chimpancé tuvo al menos dos tipos de efecto. Primero, probablemente hizo pasar a la población por un cuello de botella, en opinión de los autores. Segundo, dejó tras de sí más de 150 inserciones fijadas, algunas de las cuales pueden cambiar cómo se controlan los genes cercanos. Juntos, estos efectos pueden haber moldeado cómo divergieron las líneas del chimpancé y del humano. El trabajo ofrece un caso del segundo efecto rastreado experimentalmente; no pretende cuantificar su importancia.
El grupo de Lund dice que sus próximos pasos son investigar si otros restos virales han tenido efectos similares durante la evolución del cerebro, y si este tipo de secuencia de ADN también está vinculado con enfermedades cerebrales. La segunda parte es más que una nota al pie. Jakobsson, catedrático de neurogenética molecular, añade en el comunicado de prensa que el trabajo ayuda a comprender cómo la regulación génica puede proteger o dañar el cerebro, entre otros órganos.
También hay una lección técnica. El estudio muestra hasta dónde puede llegar la combinación de tres herramientas: modelos de células madre, lecturas de nanoporo que exponen la metilación a lo largo de inserciones virales completas, y edición genómica precisa. Cada una de ellas lleva años disponible. Usadas juntas sobre un virus de chimpancé, pudieron trazar una línea desde un fósil en el ADN, pasando por un gen silenciado, hasta un cambio medible en cómo maduran las neuronas jóvenes humanas.
La conclusión
La versión popular de esta historia es que un virus hizo a los chimpancés lo que son. La versión exacta es más pequeña y más sólida. Hace millones de años, un retrovirus invadió a los antepasados del chimpancé. Las defensas de la célula encerraron sus restos y, en un lugar, ese cerrojo alcanzó a un gen vecino. En los experimentos de Lund, quitar el resto devolvió el gen a la vida, y silenciar el mismo gen en organoides humanos ralentizó un paso de la maduración neuronal. Qué significa esto para los cerebros reales sigue siendo una cuestión abierta.
Lo que hace que el hallazgo merezca seguimiento es la dirección que abre. La evolución del cerebro humano se ha contado a menudo como una historia de genes nuevos y cerebros más grandes. Este estudio añade la posibilidad de que parte de lo que nos hace diferentes sea cuestión de aquello que no nos contagiamos: una pandemia que esquivó nuestra línea, y un gen silenciado que permaneció libre en la nuestra. Puede leer más de nuestra cobertura científica en la sección de Ciencia.
Fuentes
- Gerdes P. et al., «Retroviral insertions contributed to the divergence of human and chimpanzee brains», Science Advances, 23 de octubre de 2026 (DOI 10.1126/sciadv.aeg5791; acceso abierto, CC BY)
- Comunicado de prensa de la Universidad de Lund, «An ancient virus in chimpanzee DNA switches off a gene that is active in humans», 23 de octubre de 2026
- ScienceAlert, entrevista con Patricia Gerdes, 24 de octubre de 2026