远古病毒如何让黑猩猩的一个脑基因沉默
一种只感染过黑猩猩祖先的远古病毒,让一个人类大脑发育基因失去活性。CRISPR 与类器官实验证明了什么,又没有证明什么。
在瑞典隆德的一间干细胞实验室里,两个培养皿并排放着。其中一个里,几十万个细胞自行折叠成了早期脑组织的微小球体,细胞来自一位人类供体。另一个里,同样的配方用黑猩猩的细胞培育出了同样的球体。十五天后,两者在显微镜下几乎一模一样:同样的环形神经玫瑰花结,同样的年轻细胞组合,同样的标志物在同样的位置亮起。
随后研究人员读取哪些基因被打开。在人类的球体中,有一个基因十分活跃。在黑猩猩的球体中,同一个基因完全沉默,仿佛有人拔掉了它的插头。基因自身的序列无法解释这一点。能够解释的,是一段约七千个碱基长的外来 DNA,它在黑猩猩体内位于这个基因之中,而在我们身上哪里都没有:一枚病毒的化石。
这项研究来自隆德大学约翰·雅各布松(Johan Jakobsson)团队,合作者来自哥德堡、乌普萨拉、明尼苏达和西雅图,于 2026 年 10 月 23 日发表在 Science Advances。其核心结论谨慎而引人注目:一种感染过黑猩猩祖先、却从未感染过我们祖先的远古逆转录病毒,留下了一个印记,至今仍让一个人类特有的脑基因在黑猩猩细胞中保持关闭。我们曾在论文发表当天报道过这一结果。本文将探讨这个实验是如何运作的,为什么证据比一条标题所能显示的更有力,以及它在哪里止步。
几乎相同的基因,截然不同的大脑
这个谜题由来已久。人类大脑的大小约为黑猩猩的三倍,皮层中的神经元更多,神经元之间的连接也更多。然而,人类与黑猩猩的蛋白质编码序列有超过 96% 是相同的。如果构建基本零件的配方几乎一样,差异就一定藏在别处。
生物学家一直在基因组中不编码蛋白质的部分寻找答案:那里有开关、调光器和书签,决定哪些基因被读取、何时读取以及读取的强度。这片非编码区域巨大而难以解读。它最大的组成部分之一是转座元件,即能把自己复制到新位置的 DNA 序列。此前的研究,包括隆德这个团队自己的工作,已经把其中一些序列与发育中大脑里人类特有的基因活动联系起来。但正如这篇新论文所说,这类元件对灵长类大脑物种形成的贡献“在很大程度上仍未被探索”。
在转座元件中,有一个家族的来历格外生动。内源性逆转录病毒(ERV)是真实感染留下的遗迹。
病毒如何成为基因组的一部分
逆转录病毒会把自己的遗传物质复制到所感染细胞的 DNA 中。通常这个细胞会随宿主一起死亡,病毒 DNA 也随之消失。但极偶然地,被感染的细胞是卵子、精子或早期胚胎细胞。这样一来,病毒 DNA 就会像基因组的其他片段一样被遗传下去。如果携带者的谱系存活下来,这一插入就可能在整个种群中扩散并固定下来,在每个个体中都相同。
在灵长类的历史上,这种事情发生过很多次。人类和黑猩猩基因组中至少有 8% 由这样的残留物构成,要么是完整的原病毒,要么只是其两端的短序列。比较两个基因组,可以看出哪些大流行袭击了哪个谱系。自我们的祖先与黑猩猩的祖先分开以来的大约五百万到七百万年里,只有少量属于逆转录病毒 HERV-K 一类的病毒在人类基因组中安顿下来。而黑猩猩谱系遭到了规模大得多的入侵。
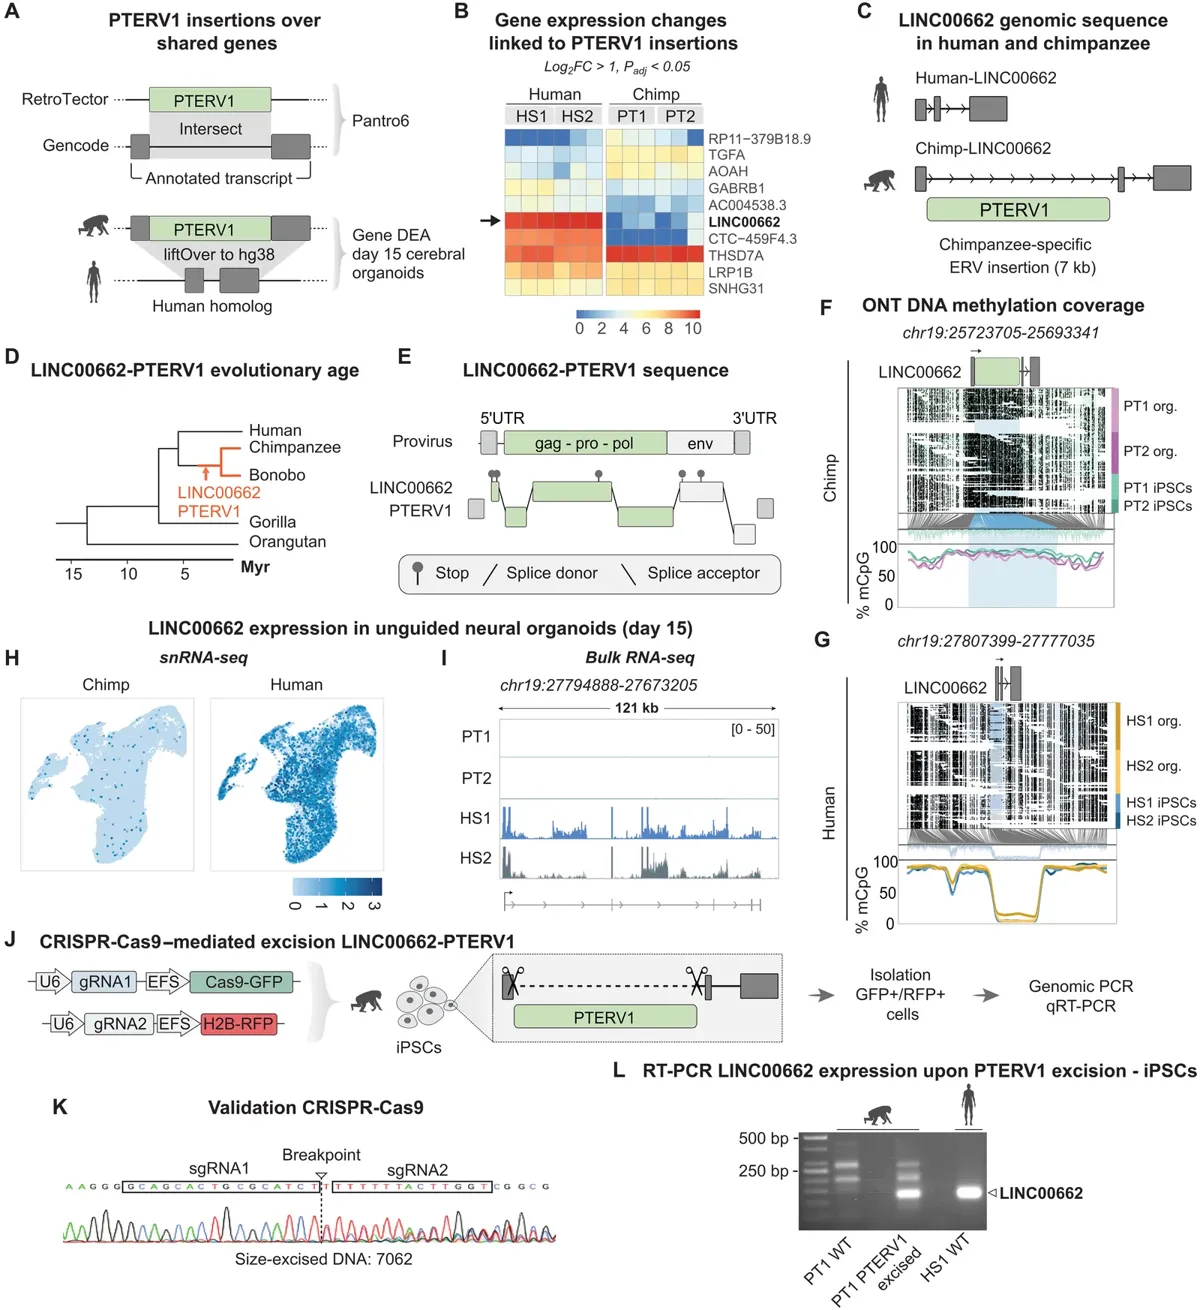
这就是 PTERV1,全称为黑猩猩内源性逆转录病毒 1(Pan troglodytes endogenous retrovirus 1)。新论文统计出黑猩猩参考基因组中有 158 个 PTERV1 元件,长度从 2 千到 14 千个碱基不等,使它成为那里最丰富的 ERV 家族之一。倭黑猩猩和大猩猩身上也有 PTERV1,但几乎从不在相同的位置:黑猩猩与大猩猩两个谱系只共有一处插入。这种模式表明,病毒是各自独立地一次又一次入侵每个谱系的。在人类身上,它完全不存在。
我们为何幸免,尚无定论。作者指出了两种可能。其一是地理因素:我们的祖先或许根本没有与被感染的猿类共享栖息地。其二是生物学因素:每种灵长类都会产生一种名为 TRIM5α 的抗病毒蛋白的不同版本,针对的目标各不相同,论文引用的早期研究表明,人类版本能阻止 PTERV1 感染人类细胞。无论哪种情况,一场改写了黑猩猩 DNA 的大流行与我们擦肩而过。
这样的大流行对遭受它的物种来说代价高昂。作者指出,它很可能让黑猩猩和倭黑猩猩的祖先经历了一次种群瓶颈。一个现代的类似例子正在澳大利亚上演:考拉逆转录病毒 KoRV-A 在野生考拉之间传播,同时进入它们的生殖细胞,并伴随着更沉重的疾病负担,包括很高的癌症发病率。这一过程被称为内源化,在进化时间尺度上十分罕见,因此 PTERV1 是研究人员仍能在基因组记录中研究的少数案例之一。
观察一个无法取样的大脑
比较人类与黑猩猩发育中的大脑有一个实际难题:没有人能取到黑猩猩的早期脑组织。多年来,这一点阻碍了整个领域。变通的办法是诱导多能干细胞(iPSC)。研究人员取普通的皮肤或血液细胞,用一组因子的“鸡尾酒”对其重编程,直到它们表现得像胚胎干细胞,几乎能变成任何组织。其他实验室制作的黑猩猩 iPSC 细胞系现在已经存在,这为这项研究打开了大门。
隆德团队使用了两个人类细胞系和两个黑猩猩细胞系,每个物种各一雌一雄,并让它们全部走过同一个所谓“非定向神经类器官”的方案。“非定向”意味着不引导细胞朝任何特定脑区发育;它们自行组织成早期神经组织的混合体。团队调整了方案,使人类和黑猩猩的类器官在几乎相同的条件下生长。到第 15 天,它们的大小、形状和神经玫瑰花结都相同。单细胞核 RNA 测序读取每个细胞核中的活跃基因,结果显示两个物种有相同的细胞类型:主要是神经祖细胞和年轻的神经元。
这种匹配是整个结果默默无闻的基石。如果黑猩猩的类器官长得不好或与众不同,任何基因差异都可以归咎于培养皿。因为类器官如此相似,一个在一个物种中开启、在另一个物种中关闭的基因,就很难被当作假象而不予理会。
第二项技术要素是在 Oxford Nanopore 仪器上进行的长读长 DNA 测序。这台机器让单个 DNA 分子穿过一个微小的孔,不仅读取碱基,还读取其上的化学标签,包括把 DNA 标记为“沉默”的甲基基团。由于读长很长,它们可以一次覆盖整个插入的病毒及其周边区域,在单个碱基的分辨率上解析甲基化,而不是对成千上万个细胞取平均。
158 座沉默之岛
测序首先显示,黑猩猩干细胞和第 15 天的黑猩猩类器官中,几乎每一个 PTERV1 拷贝都被完全甲基化。甲基化是细胞锁住它不信任的 DNA 的方式。病毒残留物是首要目标,因为被重新激活的病毒很危险。灵长类基因组为这项工作配备了一支精密的防御部队:一个庞大的 DNA 结合蛋白家族,称为 KRAB 锌指蛋白(KZNF),它们识别转座元件,并招募一种伙伴蛋白 TRIM28,在其上构建紧密而沉默的染色质结构。
作者尚未确定是哪种 KZNF 识别 PTERV1,因此这部分故事是一个模型而非测量结果。但结果是实测的:158 个黑猩猩特有的封闭染色质岛,人类基因组中一个也没有。用作者的话说,它们是物种特异性的异染色质结构域。这种防御有一个副作用。本意是让病毒保持安静的标记,可能会泄漏到相邻的 DNA 上。
还有一个迹象表明,进化一直在悄悄监管这场入侵。大多数 PTERV1 拷贝位于基因之间。当它们确实落在基因内部时,大多朝向与基因相反的方向,这是最不容易破坏基因的取向。干扰较大的拷贝大概已被淘汰。作者把这解读为纯化选择的迹象。
寻找沉默的基因
沉默之岛只有落在某些东西附近时才有意义。因此团队提出了一个狭窄的问题:在两个物种中都存在的基因里,哪些在其基因体内完整地含有一个 PTERV1 插入?答案是 45 个基因。接着他们用批量 RNA 测序和一个标准阈值检查其中哪些在人类与黑猩猩类器官中表现不同:活性至少相差两倍且具有统计学显著性。十个基因通过了筛选,既有蛋白质编码基因也有非编码基因,大多数的病毒藏在内含子里,也就是基因内部的非编码片段。
排名第一的候选者是一个名为 LINC00662 的基因。它不制造蛋白质。它制造的是一种长链非编码 RNA,即 lncRNA:这是一种从 DNA 复制而来、随后以 RNA 的形式发挥作用而从不被翻译的分子。在人类类器官中,LINC00662 高度活跃。在黑猩猩类器官中,它完全沉默。其余九个基因本身也引人入胜;论文列出了例如一个 GABA-A 受体亚基的基因,它与突触信号传递有关,而且据作者引用的文献,还与精神分裂症有关。但 LINC00662 的开关对比最为清晰。
接着是一项在新闻摘要里容易被略过、在实验室里又很难造假的检验:这是不是两个黑猩猩细胞系的怪癖?作者回头查阅了公开数据。LINC00662 在人类细胞模型中活跃,但在黑猩猩、倭黑猩猩、猩猩和猕猴的神经细胞中沉默。另外八只黑猩猩个体的诱导干细胞讲述了同样的故事。而来自 GTEx 项目的人类组织数据显示,这个基因在全身被广泛读取,在大脑和睾丸中活性更高。
一块病毒化石的解剖
黑猩猩版本的 LINC00662 位点与人类版本有一处重大差异:一个插入的 6915 个碱基长的 PTERV1 原病毒,位于基因的第一个内含子中。研究人员把两条序列比对后,在那里没有发现其他重大差异。在遗传学中,这就是最接近“没有不在场证明的嫌疑人”的情形。
大猿类完整的端粒到端粒基因组组装让团队得以大致确定这一事件的年代。这个插入存在于黑猩猩和倭黑猩猩中,但不存在于人类中,因此它发生在人类谱系分出之后、黑猩猩与倭黑猩猩分道扬镳之前,大约在 150 万到 500 万年前之间。原病毒的两端在插入的那一刻是完全相同的,而它们之间仅相差 1.2%,证实这次插入从进化角度看还很年轻。
邻居们则讲述着各自的故事。在大猩猩和猕猴中,包含 LINC00662 的整个 30 万个碱基长的片段都不存在。猩猩具有该基因区域,但在其上游带着一个不同的转座子,一个 8.8 千个碱基长的 LINE-1 元件。作者得出结论,只有人类基因组拥有功能性的 LINC00662 单元。从这个意义上说,这个基因是人类特有的转录本,而不是一个被丢失的黑猩猩基因。
病毒本身已经死了。它编码核心蛋白和包膜的基因布满了移码突变和提前出现的终止信号,因此这个原病毒几乎肯定无法产生新的病毒。它是一块惰性的化石。不过,死了并不等于无害:它的 DNA 仍在那里,可以被识别并被锁定。
而它确实被锁定了。纳米孔读段显示,黑猩猩细胞中插入的病毒被高度甲基化,两侧的区域也是如此。在人类细胞中,同一位点几乎没有甲基化。一个以化学方式附着在病毒上的标记,似乎已扩散到基因自身的起始位点。另一层证据指向同一个方向。在人类神经祖细胞中,该基因的起始位点带有 H3K4me3,这是活跃启动子典型的组蛋白修饰;在黑猩猩细胞中,这个标记缺失,取而代之的是甲基化。
挽救实验
相关性不是证明。决定性的一步是移除病毒,看基因是否会苏醒。团队设计了两条向导 RNA,分别瞄准插入两侧独特的 DNA,并借助慢病毒载体将它们与 Cas9 酶一起送入黑猩猩干细胞。Cas9 在两处切割,细胞通过连接外侧两端来修复断裂,把中间的片段留在外面。扩增子测序证实,这个约七千个碱基长的原病毒已被切除。
然后是读数。在经过编辑的黑猩猩细胞中,LINC00662 表达了。这个在每一份黑猩猩样本中都沉默的基因被打开了,而位点上的其他任何东西都没有改变。
“这表明,导致黑猩猩中该基因被关闭的,确实就是这个病毒插入。”——帕特里夏·格德斯(Patricia Gerdes),隆德大学博士后研究员,论文第一作者,出自该校新闻稿
有必要准确说明这一点解决了什么。它解决的是:在这些细胞中,PTERV1 插入就是 LINC00662 沉默的原因。它没有解决的是,这对黑猩猩的大脑是否产生了影响。格德斯在接受 ScienceAlert 采访时对此说得很明确:移除这个插入“并不能说明移除它就会改变大脑发育”,而在成年大脑中这样做“也无法撤销大脑早期的发育”。这个实验是在培养皿里的干细胞中进行的,不是在神经元中,更不是在动物身上。
这个基因在人类大脑中做什么
如果一个基因是人类特有的、在黑猩猩中被沉默,那么顺理成章的下一个问题就是它在我们身上做什么。论文在这里从进化转向细胞生物学。公开数据显示,LINC00662 在人类大脑中的活性很早就达到峰值,大约在受孕后 10 到 12 周,然后逐渐下降直至成年。团队确认了该基因在 7 周和 11 周胎儿前脑组织中的表达,并对 9 周和 10 周的胎儿大脑进行了长读长 RNA 测序,显示该基因会被剪接,并产生该分子的数种版本。
分子在细胞中的位置暗示了它的工作。有些 lncRNA 作用于其产生位置附近的 DNA;另一些则在远离它的地方工作。细胞组分分离显示,LINC00662 几乎只存在于细胞质中,在细胞核之外,因此它在远离自身基因的地方起作用。为了弄清它与什么共同作用,研究人员用生物素标记的 DNA 探针把这个分子连同粘附在它上面的一切“钓”出来,然后通过质谱鉴定这些蛋白质。针对人类基因组中不存在的序列设计的探针用作阴性对照。
与该分子一同被捕获的蛋白质,在轴突延伸和神经发育方面的功能上富集。例子包括 FLNA、MYH10、巢蛋白、波形蛋白和 DPYSL2,它们都是细胞内部支架即细胞骨架的一部分,在文献中都与年轻神经元伸出分支的方式有关。通俗地说,LINC00662 似乎和让新生神经元长出其线路的分子机器待在一起。
在人类类器官中把它关掉
为了检验这种关联是否有意义,团队做了与挽救实验互为镜像的实验。他们用 CRISPR 干扰使人类细胞中的 LINC00662 沉默,这是一种不切割 DNA、而是把一个阻遏物停放在基因起始位点上的变体。由于该阻遏结构域与细胞用来锁定转座子的结构域相同,它也提高了整个位点的甲基化水平,作者指出,这模拟了该基因黑猩猩版本的表观遗传状态。沉默几乎是完全的。
在该基因被关闭的人类神经祖细胞中,FLNA、MYH10 和巢蛋白在细胞内改变了位置,各自在细胞质中的量增加。作者将此解读为 LINC00662 通常会在那里使这些蛋白质不稳定。这是对每种条件下几十个细胞的成像数据的解释,论文本身也将其视为有提示性而非定论。
类器官讲述的故事则更具体。团队培养了沉默的和对照的类器官,时间为 15 天和 30 天。到 15 天时,它们无法区分。到 30 天时,新生神经元通常开始伸出它们最初的突起,沉默的类器官在这些细胞所在的区域,对 TUJ1(年轻神经元内部骨架的一种蛋白)的染色明显变弱。由祖细胞构成的玫瑰花结本身看上去没有变化。第二个标志物 MAP2 呈现相同趋势,但没有达到统计学显著性。
对来自 85 个类器官(61 个沉默的,24 个对照)的 119,674 个细胞核进行单细胞核测序,显示该基因的缺失并未改变出现的细胞类型。它在第 30 天改变的,是与轴突和树突生长相关的基因的活性。也许令人惊讶的是,其中许多基因是上调而不是下调,包括 NOTCH1、CDH4、SLIT3 和 KALRN。作者提出一种代偿性反馈:难以伸展分支的神经元,可能会作为反应提高促进分支生长的基因的活性。他们坦率地说,自己并不完全理解这一点。
由此浮现出的画面是:这个基因并不决定神经元成为什么,而是影响它一旦存在后成熟得有多好。这是一个适度的角色。但它恰恰也是该领域长期以来怀疑对人类大脑很重要的那种角色:作者指出,他们的结果支持这样一种观点,即树突和突触成熟方式的差异有助于产生人类特有的大脑功能。
带有这一插入的人类会有黑猩猩的大脑吗?
每位读者都会问一个显而易见的问题:带有这一插入的人类会拥有类似黑猩猩的大脑吗?作者并未这样声称,第一作者也解释了原因。格德斯在对 ScienceAlert 说,如果人类带有同样的插入,它“很可能会关闭 LINC00662 并改变脑细胞的发育”。但她补充道:“我们无法预测这会产生某种特定的脑形状、能力或行为。其效果还可能取决于周围的人类 DNA 和其他基因。”
这种谨慎已内置于数据之中。这些类器官是小型的早期模型,培养时间不超过一个月。LINC00662 的缺失降低了这些类器官特定区域的一个神经元成熟标志物;没有任何实验测量了脑的大小、折叠或认知。敲低是在人类细胞中进行的,因为这个基因是人类特有的;还没有人把这个基因放回黑猩猩的神经元中,看它们是否会以不同方式成熟。
还有一些作者自己点明的机制性悬而未决的问题。识别 PTERV1 的是哪种 KRAB 锌指蛋白尚未找到。插入的沉默究竟如何扩散到相邻的启动子,需要进一步的分子研究。而且 lncRNA 在培养皿中向来难以研究,作者说,这限制了对许多由干细胞衍生的人类与黑猩猩神经元比较研究的解读。
这项研究自身的数据表明,LINC00662 是一个例子,而不是全部解释。作者发现了 158 个 PTERV1 岛,以及 45 个其内部完整含有插入的基因,其中十个在物种间存在差异。其中另一个基因 LRP1B,在文献中与多种癌症相关。作者得出结论,PTERV1 对黑猩猩基因调控的影响可能很广泛,并指出甲基化向邻近基因的扩散在许多物种的其他类别重复序列中已有记录。
因此,最审慎的解读是一种适度而有趣的解读。袭击黑猩猩祖先的逆转录病毒大流行至少产生了两类影响。第一,按作者的看法,它很可能让种群挤过了一个瓶颈。第二,它留下了超过 150 个固定的插入,其中一些可以改变附近基因的调控方式。这些影响合在一起,可能塑造了黑猩猩与人类谱系如何分道扬镳。这项工作提供了第二类影响的一个经实验追踪的实例;它并不声称要量化其重要性。
隆德团队表示,下一步是研究其他病毒残留物在大脑进化过程中是否产生过类似影响,以及这类 DNA 序列是否也与脑部疾病有关。后一部分不只是脚注。分子神经遗传学教授雅各布松在新闻稿中补充说,这项工作有助于我们理解基因调控如何保护或损害大脑以及其他器官。
这里还有一个技术上的教益。这项研究表明了三种工具结合起来能走多远:干细胞模型、能沿整个病毒插入揭示甲基化的纳米孔读段,以及精确的基因组编辑。每一种都已问世多年。把它们一起用在一种黑猩猩病毒上,就能描出一条线,从 DNA 中的一块化石,经过一个沉默的基因,到年轻的人类神经元成熟方式上一个可测量的变化。
要点
这个故事的流行版本是:一种病毒造就了黑猩猩的样子。准确的版本更小,也更牢靠。数百万年前,一种逆转录病毒入侵了黑猩猩的祖先。细胞的防御把它的残留物锁了起来,而在一个地方,这把锁伸到了邻近的基因。在隆德的实验中,移除这块残留物让基因回来了,而在人类类器官中使同一个基因沉默,则减缓了神经元成熟的一个步骤。这对真实的大脑意味着什么,仍然悬而未决。
让这一发现值得关注的,是它打开的方向。人类大脑的进化常被讲述为新基因和更大大脑的故事。这项研究增添了一种可能:我们之所以不同,有一部分在于我们没有染上什么:一场错过了我们谱系的大流行,以及一个在我们身上依然自由的、在别处被沉默的基因。您可以在科学版块阅读更多我们的科学报道。
资料来源
- Gerdes P. et al.,“Retroviral insertions contributed to the divergence of human and chimpanzee brains”,Science Advances,2026 年 10 月 23 日(DOI 10.1126/sciadv.aeg5791;开放获取,CC BY)
- 隆德大学新闻稿,“An ancient virus in chimpanzee DNA switches off a gene that is active in humans”,2026 年 10 月 23 日
- ScienceAlert,对帕特里夏·格德斯的采访,2026 年 10 月 24 日